
Сейчас я оформляю монографию Апиология и сегодня как раз параграф на заданную тему. С вашего позволения размещу его здесь. Будет много букв и кому то покажется скучно. Но поводов для веселья и нет.
2.2 Эволюция пчелы медоносной
Эволюционный путь, приведший к роду Apis, берёт начало от ос семейства Crabronidae, часть представителей которых использовала растительные ресурсы. Постепенный переход к фитофагии сопровождался формированием комплекса специализированных адаптаций, обеспечивших эффективное использование нектара и пыльцы как основного корма.
Ключевыми этапами этой трансформации стали специализированные адаптации, которые можно разделить на морфологические (связанные со сбором корма) и поведенческо-физиологические (связанные с эусоциальностью и кормлением потомства).
Морфологические адаптации к сбору и использованию растительных кормов. Важнейшими приобретениями стали развитие опушения тела, служащего для эффективного сбора пыльцы, и формирование скопы — структуры на задних ногах рабочих особей, предназначенной для транспортировки пыльцы. Параллельно происходила редукция шипов на ногах, утративших значение в связи с отказом от хищничества.
Поведенческие и физиологические изменения, связанные с эусоциальностью. Переход к питанию растительными кормами повлёк за собой трансформацию системы кормления потомства: личинки стали получать растительный корм (пергу), а взрослые особи специализировались на сборе нектара и пыльцы. Это сопровождалось развитием соответствующих пищеварительных и запасающих структур, включая медовый зобик.
Палеонтологическая летопись не содержит прямых свидетельств ранних этапов становления рода Apis, фиксируя лишь уже сформированные таксоны. Первые ископаемые остатки представителей рода Apis обнаружены в отложениях нижнего миоцена на территории Западной Германии. В верхнем миоцене Азии найдены окаменелости гигантских пчёл, идентифицированные как предки Apis dorsata. Эти данные согласуются с молекулярно-филогенетическими оценками, согласно которым дивергенция основных видов рода (A. florea, A. dorsata, A. cerana, A. mellifera) произошла в олигоцене, примерно 33 млн лет назад.
Формирование эволюционной линии, ведущей к роду Apis, происходило синхронно с расцветом покрытосеменных в меловом периоде (около 150 млн лет назад). Непосредственно дивергенция видов рода, включая линию, приведшую к Apis mellifera, произошла значительно позже — в олигоцене, около 33 млн лет назад.
Палеоклиматические реконструкции подтверждают, что 140 млн лет назад территория современной Европы находилась в зоне тропического климата. Последующее похолодание обусловило формирование различных адаптивных стратегий гнездования: в северных регионах Евразии закрепились виды, строящие гнёзда в полостях (Apis cerana, Apis mellifera), тогда как в южных областях сохранились виды с открытым типом гнездования (Apis dorsata, Apis florea).
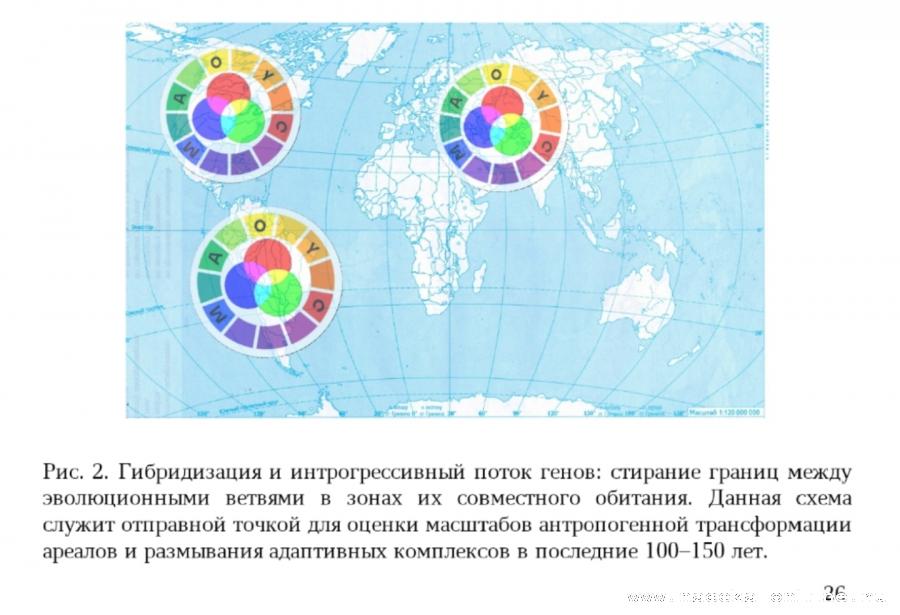
Ключевую роль в структурировании современного внутривидового разнообразия Apis mellifera сыграла работа Ф. Руттнера, заложившего основы филогеографической классификации подвидов. На базе морфометрического анализа (в первую очередь — изучения жилкования и пропорций крыльев) Руттнер выделил четыре основные эволюционные ветви: A (африканская), M (североевропейская), C (средиземноморская) и O (ближневосточная). Эта схема, представленная в монографии «Biogeography and Taxonomy of Honeybees» (1988), не только систематизировала известные подвиды, но и предложила эволюционную интерпретацию их разнообразия, трактуя дивергенцию линий как результат чередования миграций и длительных периодов географической изоляции.
Последующие молекулярно-генетические исследования подтвердили общую структуру руттнеровской классификации, одновременно уточнив и дополнив её. Анализ митохондриальной ДНК и микросателлитов (работы Garnery, Franck и соавт.) позволил выявить дополнительные линии — Y (аравийская/восточноафриканская) и Z (подлиния в составе ветви A), а также количественно оценить зоны гибридизации. Полногеномное секвенирование и анализ однонуклеотидных полиморфизмов (исследования Wallberg, Meixner и соавт.) обеспечили более точную датировку событий дивергенции (около 6 млн лет для основных ветвей) и выявили новые локальные линии (L в Египте, U на Мадагаскаре), которые могут отражать как древние волны расселения, так и следы исторической гибридизации.
Расселение Apis mellifera по территории Старого Света интерпретируется в рамках нескольких конкурирующих гипотез, различающихся в определении первичного центра происхождения и последовательности экспансий:
Концепция Ф. Руттнера, построенная (на основе морфометрических данных) рассматривает Ближний Восток как первичный центр, откуда происходила миграция с последующим распространением в Африку и Европу.
Модель M. C. Arias и W. S. Sheppard предполагает миграцию в Восточную Европу через Ближний Восток и одновременное продвижение в Африку с дальнейшим распространением в Западную Европу.
Гипотеза C. W. Whitfield и соавт. рассматривает Африку как первичный центр происхождения с тремя последовательными экспансиями в Евразию.
Несмотря на различия в деталях, все эти модели сходятся в признании того, что экспансия вида запустила интенсивные процессы микроэволюции, характеризовавшиеся чередованием миграций, освоения новых климатических зон и периодов изоляции.
Результатом этих процессов стало формирование естественных ареалов подвидов, адаптированных к специфическим климатическим условиям: в тропических и субтропических регионах закрепились стратегии открытого гнездования и высокой мобильности, в умеренных и континентальных — способность к формированию плотного зимнего клуба, экономному расходованию кормовых запасов и синхронизации циклов размножения с коротким периодом медосбора.
Хотя первоначальная дивергенция ветвей Apis mellifera, описанная Ф. Руттнером, происходила под действием естественных факторов — климата, географической изоляции и локальных экологических условий, — современное состояние внутривидовой структуры вида в значительной степени определяется антропогенными воздействиями.
Транслокация и коммерческое разведение. Начиная с XIX века, активное перемещение пчелиных семей в рамках сельского хозяйства и торговли привело к нарушению исторически сложившихся границ ареалов. Особенно масштабным было распространение подвидов с высокой медовой продуктивностью (в первую очередь A. m. ligustica и A. m. carnica) за пределы их естественных регионов. Эти подвиды стали доминировать в коммерческих пасеках Европы, Северной и Южной Америки, а также в ряде районов Азии, вытесняя аборигенные формы или смешиваясь с ними.
Гибридизация и размывание адаптивных комплексов. Перемещение пчёл между регионами создало условия для масштабной межподвидовой гибридизации. В зонах контакта ветвей (например, на Балканах, Кавказе, в Центральной Европе) формируются гибридные популяции, в которых классические адаптивные признаки оказываются «размыты». Так, сочетание высокой ройливости африканских линий с продуктивностью средиземноморских форм может давать краткосрочный экономический эффект, но часто снижает устойчивость семей к местным климатическим условиям и паразитам. Наиболее известным примером неконтролируемой гибридизации стало распространение так называемых «африканизированных пчёл» в Америке — гибридов A. m. scutellata с европейскими подвидами, отличающихся повышенной агрессивностью и высокой адаптивностью к тропическим условиям. Повышенная оборонительная реакция этих гибридных семей во многом обусловлена сохранением и усилением африканских поведенческих паттернов в сочетании с высокой репродуктивной активностью.
Влияние на зимостойкость и устойчивость к паразитам. Вмешательство человека нередко нарушает баланс, сложившийся в ходе длительной локальной адаптации. Например, завоз теплолюбивых подвидов в северные регионы может приводить к массовой гибели семей в зимний период из-за недостаточной зимостойкости. Аналогично, ослабление гигиенического поведения в результате гибридизации делает семьи более уязвимыми к патогенам, что усугубляется интенсификацией пчеловодства и высокой плотностью пасек.
Генетическое «загрязнение» аборигенных популяций. Генетическое „загрязнение“ (в литературе также используется термин genetic introgression) приводит к потере уникальных морфометрических и поведенческих, сформированных в условиях длительной изоляции. Аборигенные подвиды, такие как A. m. mellifera (тёмная лесная пчела), всё чаще сталкиваются с проблемой генетического «загрязнения» из-за скрещивания с коммерческими линиями. В ряде стран (например, в Скандинавии, Великобритании, некоторых регионах России) для сохранения генетической чистоты аборигенных пчёл вводятся специальные программы: ограничение завоза чужих маток, создание «резерватов» с жёстким контролем пасек, использование молекулярно-генетических маркеров для идентификации происхождения семей.
Таким образом, антропогенные факторы стали мощным эволюционным драйвером, изменившим структуру внутривидового разнообразия Apis mellifera. Если схема Руттнера отражает историческую картину формирования ветвей под действием естественных условий, то современные генетические данные демонстрируют, насколько сильно эта картина трансформировалась под влиянием человека. Сохранение аборигенных подвидов и контроль гибридизации становятся не только природоохранной, но и практической задачей пчеловодства, поскольку именно локальные адаптивные комплексы обеспечивают устойчивость семей к специфическим условиям среды и патогенам.